Khám phá · đọc khoảng 18 phút
Các loài cá thuộc chi Botia ở khu vực Ấn Độ - phần 1
Theo Loaches Online
Giới thiệu
Những năm gần đây có khá nhiều công trình về các loài cá họ Botiidae (ở đây dùng Botiidae thay vì Cobitidae, theo Šlechtová và cs., 2006). Nhưng phần lớn chỉ bàn chuyện danh pháp từ bậc chi trở lên, hoặc mô tả và xét danh pháp đồng nghĩa của các chi, các loài ở vùng nước Trung Quốc, Lào, Thái Lan, Campuchia và Indonesia. Vài năm gần đây chỉ có Kottelat (2004) và Ng (2007) bàn kỹ về các loài chi Botia, khi mô tả loài mới từ Myanmar. Nalbant (2002) cũng có bàn về Botia, nhưng chủ yếu xoay quanh quan hệ của chi này với các Botiidae khác (phát sinh chủng loài).
Phần này tập trung vào các loài Botia ở "khu vực Ấn Độ" (xem mục "Phân bố"). Công trình gần đây duy nhất từng cố làm rõ danh tính và danh pháp đồng nghĩa của Botia ở khu vực này là của Menon (1993). Có điều kết quả của nó vẫn để lại nhiều nghi vấn, cho cả giới ngư học lẫn người chơi cá. Các danh pháp đồng nghĩa ông đề xuất gần như không kèm lập luận, còn ảnh chụp thì chất lượng kém. Dù vậy, Menon vẫn đưa ra một số thông tin hữu ích mà ngoài công trình đó ra thì không thể tìm được. Trước bản tổng quan của Menon, tài liệu về Botia ở khu vực này rất rời rạc. Phần lớn chúng dựa vào quan điểm của các tác giả đi trước, hoặc vào những lần nhận dạng nhầm.
Ý tưởng làm rõ thêm xuất phát từ một cuộc trao đổi với người chơi cá Andy Rushworth. Cả hai đều thấy bực mình vì những con cá trông na ná nhau trong giới cá cảnh lại mang đủ thứ tên khác nhau, trong khi các công trình khoa học cũng nhận dạng và bàn luận thiếu rõ ràng. Vì thế mới có nỗ lực này, để thử xem có làm sáng tỏ thêm được phần nào hay không.
Lấy công trình của Menon làm nền, phần dưới đây tập hợp rất nhiều bài báo về nhóm cá này, kết hợp với thông tin từ mẫu bảo quản và mẫu sống, để đưa ra một số thông tin (hy vọng là) hữu ích. Tuy vậy, dù tình trạng và danh tính của vài loài hy vọng đã rõ hơn, nghiên cứu này cũng làm nảy ra thêm những câu hỏi chưa thể giải quyết trọn vẹn ở đây. Kết quả không giúp đơn giản hóa hay giảm bớt số tên đang dùng mà lại theo chiều ngược lại. Lý do là, theo nhận định ở đây, chi này có nhiều loài hoặc phân loài trước đây bị gộp chung dưới một tên. Công trình này có lẽ làm bức tranh rối hơn. Nhưng làm vậy vẫn thỏa đáng hơn là cứ gộp tên lại khi dường như có những khác biệt cần ghi nhận. Công trình gần đây của Ng & Edds (2005) và Ng (2006) về cá da trơn Pseudecheneis cho thấy cái từng được xem là vài loài phân bố từ Nepal, Ấn Độ, Bangladesh, Myanmar, Lào đến Trung Quốc thật ra là rất nhiều loài. Từ những phát hiện bước đầu, Botia có vẻ cũng ở tình trạng tương tự.
Cần nói rõ, đây hoàn toàn không phải một bản rà soát đầy đủ và dứt điểm cho chi này. Một bản rà soát như thế vượt quá kiến thức, thời gian và khả năng của người thực hiện. Mẫu vật trong các bộ sưu tập ít, lại cũ và chất lượng hạn chế, nên gần như không thể khẳng định kết quả ở đây phản ánh đúng bức tranh thật của chi. Muốn có bức tranh đó thì phải thu mẫu khắp khu vực, rồi so sánh cá ở các độ tuổi và giới tính khác nhau giữa các địa điểm. Hữu ích nhất là bắt cá về nuôi sống và theo dõi hoa văn thay đổi ra sao khi chúng lớn. Menon (1993) đã làm việc đầu tiên ở mức độ nào đó, và đến nay vẫn là nỗ lực duy nhất. Nhưng như đã nói, ông không trình bày hay giải thích lý do cho các danh pháp đồng nghĩa của mình. Ông có lợi thế hơn hầu hết mọi người vì dễ tiếp cận các mẫu quan trọng trong bộ sưu tập ở Ấn Độ. Với lợi thế đó, ông có thể chỉ ra khác biệt về hoa văn và màu sắc giữa các vùng phân bố, cũng như những thay đổi xảy ra khi một số nhóm loài lớn lên hoặc thành thục sinh dục (kể cả các thay đổi hình thái đi kèm). Xem thêm ở mục "Nhận dạng theo hoa văn". Phân tích DNA ty thể cũng có thể hữu ích cho các nghiên cứu sau, nhất là với phức hợp B. almorhae.
Bên cạnh các mẫu vật bảo tàng quan trọng và thông tin đi kèm, thông tin từ những người xuất khẩu, bán lẻ và nuôi các loài cá này cũng cực kỳ quý. Có thể coi đây là ví dụ điển hình cho thấy người chơi cá và dân xuất khẩu, bán lẻ cá cảnh hoàn toàn có thể góp phần chính đáng và hữu ích vào nghiên cứu cá.
Vật liệu và phương pháp
Phần mô tả màu sắc, hoa văn cùng một số chỉ số đếm (meristic) và số đo (morphometric) dựa trên cả mẫu sống (hoặc chưa bảo quản), trong đó một số có dữ liệu địa điểm chính xác, lẫn các mẫu bảo quản được nhắc đến. Tiếc là các mẫu bảo quản không thể kiểm tra trực tiếp. Thay vào đó phải dựa vào hình ảnh, ảnh X-quang, và may là các nhân viên có tên trong phần cảm ơn đã vui lòng cung cấp mọi thông tin cần thêm. Số tia vây đuôi không tính các tia procurrent hay tia chính ngoài cùng. Khi đếm tia vây, một tia vẫn tính là tia riêng dù nó dùng chung pterygiophore với tia trước. Ở vây lưng, hai tia cuối (một số tác giả đôi khi đếm là 1 tia hoặc ½ tia) bị chẻ đôi dọc giữa hoặc không phân nhánh, và thường không có pterygiophore bình thường, hoặc không có gì cả. Dù vậy, ở đây chúng được đếm là 2 tia, vì khi đếm trên cá sống người ta thường chỉ thấy đó là 2 tia chứ không phải 1 hay ½ tia. Số tia chính đếm được có thể không chính xác. Một số số liệu lấy từ tài liệu tham khảo hoặc từ mẫu không chụp X-quang, số khác lấy từ ảnh X-quang, vốn thường cho thấy cả những tia nằm dưới lớp thịt. Ký hiệu 'sp.' dùng cho trường hợp được cho là loài hoặc phân loài chưa mô tả, khi có thể đưa ra thông tin cụ thể về địa lý động vật và điểm khác với các loài khác. Ký hiệu 'form' (dạng) dùng khi khác biệt tinh tế hơn hoặc phân bố địa lý kém rõ ràng hơn. Trong cả hai trường hợp, tên hay nhãn gắn cho chúng không nhằm trở thành tên loài hay phân loài hợp lệ. Với phức hợp B. histrionica, ở đây dùng 'form' vì đang có những người đủ chuyên môn hơn nghiên cứu nhóm này. Vật liệu sử dụng thuộc các cơ sở sau: BMNH (Bảo tàng Lịch sử Tự nhiên, London), USNM (Viện Hàn lâm Khoa học Tự nhiên, Philadelphia), CAS (Viện Hàn lâm Khoa học California), MNHN (Bảo tàng Lịch sử Tự nhiên Quốc gia, Paris), AMS (Bảo tàng Úc), MCZ (Bảo tàng Động vật học So sánh, Harvard), KU (Đại học Kansas), OSUS (Đại học Bang Oklahoma, Stillwater), NHSB (Hội Lịch sử Tự nhiên Bombay). Một số mẫu chỉ có số đo gần đúng, lấy từ ảnh có thước tỉ lệ, vì nơi lưu giữ không cung cấp được thông tin. Tiếc là không tiếp cận được mẫu trong các bảo tàng ở Ấn Độ hay Pakistan, trong đó có một số mẫu chuẩn (type). Tuy vậy, dữ liệu hình thái và meristic vốn ít được dùng để phân biệt cá trong chi này (thêm vào đó đã có thông tin của Menon và các mô tả gốc), nên thiếu sót này không gây trở ngại quá lớn khi bàn về tính hợp lệ của một số loài.
Phân bố / địa lý động vật
Ở đây, "khu vực Ấn Độ" gồm Nepal, Bhutan, Pakistan, Ấn Độ và Bangladesh. Phần này cũng đề cập đến các vùng lân cận có Botia: Myanmar (không đi quá sâu vì đang có một công trình riêng về Botia ở Myanmar), vùng Vân Nam của Trung Quốc, và Thái Lan. Vì một số sông lớn hoặc phụ lưu có Botia bắt nguồn từ Tây Tạng (Negi, 1994), có thể nghĩ Botia cũng có mặt ở nam Tây Tạng (Yarlung Tsangpo thuộc hệ Brahmaputra và Sengge Chu thuộc hệ Indus). Tuy nhiên, Wu & Wu (1992) và Zhang và cs. (1995) không ghi nhận Botia nào ở Tây Tạng [Xizang], còn Edds (1993 & 2007) không ghi nhận loài chạch nào ở thượng nguồn các sông Nepal. Nước ở đó có thể quá lạnh và trở thành rào cản tự nhiên (xem Petr 1999, và Petr & Swar 2002). Thay vì chú trọng quốc gia và đường biên giới do con người vạch ra, nên bàn nhiều hơn về phân bố theo các vùng nước trong khu vực. Dù sao thì chắc chắn cá không cần hộ chiếu để bơi qua nước khác! Những phát hiện của Menon (tr. 12-13, dù ông không nói rõ) và nhận xét của Kottelat (2004) gợi ra câu hỏi liệu mỗi hệ thống sông lớn (và/hoặc có thể từng con sông lớn) có loài Botia riêng hay không. Nếu đúng vậy, đây sẽ là manh mối để xác định danh tính và tính hợp lệ của các loài đang xét.
Lẽ ra phần này nên có biểu đồ đánh dấu điểm phân bố của từng loài hoặc dạng, nhưng không tìm được tài liệu nào dùng lại được. Dưới đây là các hệ thống sông hoặc sông lớn hiện biết có Botia (chỉ nêu những phụ lưu, nhánh phân lưu, bang hoặc quốc gia nhất định có liên quan, và hoàn toàn không có nghĩa Botia chỉ giới hạn ở những nơi này):
- Hệ thống sông Indus: Sông Indus bắt nguồn từ cao nguyên Tây Tạng và đi vào dãy Himalaya ở Ladakh. Sông chảy qua vùng Ladakh của Jammu và Kashmir (Ấn Độ) rồi xuống đồng bằng Pakistan. Indus có nhiều phụ lưu thoát nước cho vùng tây Himalaya. Các phụ lưu quan trọng gồm sông Jhelum (bắt nguồn từ Jammu và Kashmir), Chenab, Ravi và Beas (đều bắt nguồn từ Himachal Pradesh, Ấn Độ). Sông Sutlej (hay Satluj) bắt nguồn từ nam Tây Tạng, cắt qua dãy Himalaya chính để xuống đồng bằng Punjab (Ấn Độ) (Negi, 1994). Sông Kabul cũng là một phụ lưu. Xem Rafique (2000) để biết thêm chi tiết.
- Hệ thống sông Hằng (Ganges): Hai sông Bhagirathi và Alaknanda, đều thuộc vùng Himalaya của Uttarakhand (Ấn Độ), hợp lại thành sông Hằng. Từ đó sông chảy về hướng đông nam qua các thung lũng Himalaya, xuống đồng bằng bắc Ấn Độ. Đồng bằng sông Hằng là một lưu vực và châu thổ rộng lớn. Các phụ lưu gồm sông Kosi, Sone, Karnali / Ghaghra, Gomti, và một sông lớn là Yamuna. Sông Yamuna nhập vào sông Hằng ở Uttar Pradesh (Ấn Độ). Sông Hooghly tách ra từ sông Hằng, chảy qua Calcutta [Kolkata] rồi đổ ra vịnh Bengal. Dòng chính đi vào Bangladesh, ở đó gọi là sông Padma, và gặp sông Jamuna của hệ Brahmaputra. Hai sông này hợp với sông Meghna rồi đổ ra biển ở vịnh Bengal.
- Hệ thống sông Brahmaputra: Sông Yarlung Tsangpo bắt nguồn từ vùng Himalaya thuộc Tây Tạng. Sông vào Ấn Độ ở Arunachal Pradesh, và sau khi hợp lưu với hai sông khác thì mang tên Brahmaputra. Sông chảy qua Assam (Ấn Độ). Sang Bangladesh, sông tách làm hai nhánh. Nhánh lớn hơn gọi là Jamuna, nhập vào sông Hằng (Padma). Nhánh còn lại (sông Brahmaputra Cũ) gặp sông Meghna, con sông có phụ lưu là Surma và Barak. Hai nhánh gặp lại nhau rồi đổ ra vịnh Bengal. Sông Teesta (hay Tista) là một phụ lưu.
- Lưu vực sông Salween: Sông bắt nguồn ở Tây Tạng, chảy qua Vân Nam với tên Nộ Giang. Sau đó sông xuôi về phía nam qua Myanmar (với tên Thanlwin) rồi đổ ra biển. Sông Suriya là một phụ lưu. Sông Ataran (hay Kasat) chảy về phía Salween, nơi đổ ra biển Andaman. Hai sông này dường như nối với nhau qua sông Gyaing.
- Lưu vực sông Irrawaddy [Ayeyarwaddy]: Sông bắt nguồn ở đông bắc Myanmar, gần biên giới Trung Quốc, và chảy về hướng tây nam ra biển. Ở Vân Nam, sông có tên Đại Doanh Giang. Long Xuyên Giang ở Vân Nam (bên Myanmar gọi là sông Shweli) cũng đổ vào Irrawaddy. Sông Chindwin của Myanmar chảy vào Irrawaddy, và Chindwin có các sông nối sang Manipur (Ấn Độ). Sông Sittang không nối liền với Irrawaddy, nhưng người ta cho rằng trước kỷ Pleistocene, hạ lưu Irrawaddy từng chảy trong thung lũng này. Ở đây sông Pegu (hay Bago) được xếp vào hệ Sittang. Sông Myitmaka thuộc lưu vực Irrawaddy gặp sông Pegu ở Yangon.
Kết quả nghiên cứu này (dù còn lâu mới đủ bức tranh) cho đủ cơ sở để tin rằng nhìn chung nên đặc biệt chú ý xem mẫu Botia được tìm thấy ở hệ thống sông hay lưu vực nào. Lý do là các loài có vẻ chỉ giới hạn trong một số hệ nhất định, chứ không phân bố rộng gần như khắp nơi như nhiều ấn phẩm qua các năm vẫn ghi. Như Kottelat (2004) đã nêu khi bàn về phát sinh chủng loài của các chi, địa lý động vật phải được suy ra từ phát sinh chủng loài. Vì vậy ở đây không có ý dùng địa lý động vật để đề xuất cây phát sinh chủng loài. Điều muốn nói chỉ là địa lý động vật có thể là công cụ hữu ích khi xem xét danh tính hoặc tính hợp lệ của loài.
Do một số hệ thống sông hiện đang nối với nhau, hoặc từng nối với nhau trong quá khứ, sẽ có loài xuất hiện ở hơn một hệ thống hoặc con sông. Dù vậy, với các loài đã mô tả hiện nay, phân bố theo hệ thống hoặc sông lớn nhìn chung có vẻ như sau (ở mức đơn giản):
- Hệ Indus - B. birdi
- Thượng nguồn sông Hằng - B. almorhae
- Trung lưu sông Hằng và các dòng Himalaya đổ vào đó - B. lohachata, B. dario
- Hạ lưu sông Hằng - B. dario, B. rostrata
- Thượng nguồn Brahmaputra - B. dario
- Hạ lưu Brahmaputra - B. dario, B. rostrata
- Surma - B. dario, B. rostrata
- Krishna - B. striata
- Sittang - B. histrionica* (*xem ghi chú ở B. histrionica về chuyện hệ sông nào mới thật sự có B. histrionica đích thực)
- Ataran - B. kubotai
- Tenasserim - B. udomritthiruji
B. striata có mặt ở sông Krishna, khá xa các hệ thống và con sông kể trên, và hiện không thông nước với chúng. Menon (1993:24) đã thảo luận chuyện này, ở đó ông cũng bàn về các "làn sóng" phân bố của loài.
Nhận dạng theo hoa văn và/hoặc màu sắc
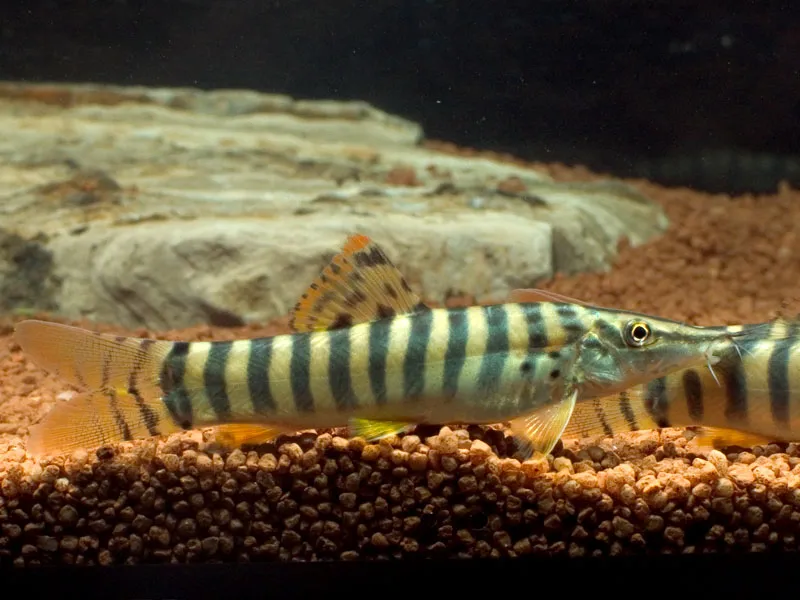
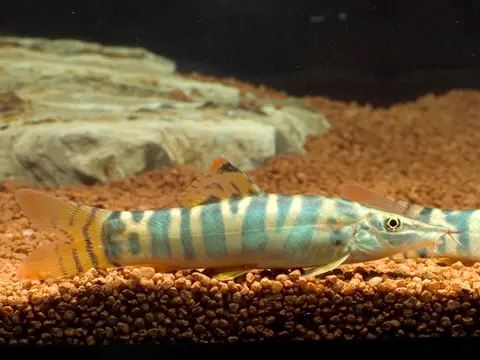
Người chơi cá đều biết hoa văn của một số loài Botia có thể thay đổi rất nhiều khi cá lớn, thậm chí khác nhau giữa những con cùng cỡ. Do thông tin hình thái và meristic giữa các loài khá giống nhau, hoa văn có thể là chỉ dấu so sánh quan trọng khi cố tách loài. Không ít người phản đối chuyện chỉ dựa vào hoa văn để tách loài. Tuy nhiên Menon (tr. 13) nói ông chủ yếu dựa vào màu sắc để phân biệt các loài Botiidae. Kottelat (2004) cũng cho rằng (có phần dè dặt) với ít nhất hai loài trong chi này, hoa văn "có tính chẩn đoán rõ rệt". Khi so sánh với một loài khác, ông chủ yếu dựa vào khác biệt hoa văn trong quá trình phát triển cá thể (cùng với phân bố). Rất khó tìm được yếu tố nào khác hữu ích tương đương. Sau khi thấy hoa văn khác nhau trên nhiều mẫu (mẫu sống và một số mẫu bảo quản) từ các hệ thống sông hoặc sông lớn khác nhau, có thể đồng ý rằng trong chi này hoa văn là yếu tố quan trọng để dùng làm công cụ chẩn đoán. Người chơi cá có lợi thế được tận mắt thấy trên cá sống màu sắc, và quan trọng hơn là hoa văn, của những con cá này qua từng giai đoạn tăng trưởng. Người chơi và các nhà xuất khẩu, nhất là những thành viên thường xuyên trên các diễn đàn như Loaches Online và Petfrd, đã góp công lớn trong việc thu thập ảnh và những quan sát thực tế về hoa văn khác nhau của các mẫu, dù khác biệt đó do phát triển cá thể, do biến dị hay do hoa văn bất thường. Bogdan Janiczak và Mark Duffill đã chụp ảnh nhiều mẫu khi chúng lớn lên, và những ảnh này góp phần vào bài viết. Hoa văn có biến dị (ở phức hợp B. almorhae chuyện này còn rối hơn) và có cả hoa văn bất thường. Dù vậy, ở một số loài, số lượng và vị trí các vạch gần như luôn cố định. Rắc rối nằm ở chỗ các vạch bắt đầu nối vào nhau (anastomose**) khi cá phát triển. Ở một số loài, các vạch còn có vẻ "rã ra", tức là trong vạch đen đặc xuất hiện những đốm nhạt (màu tùy loài hoặc dạng). Ngoài việc nối vào nhau và "rã ra", hoặc thay cho hai kiểu đó, các vạch đen có thể bắt đầu nhỏ lại hoặc đứt thành những hạt đen nhỏ hơn. Cuối cùng chúng thành các đốm, mảng, vạch hoặc dạng lưới đen không còn liền nhau (tùy loài). Bên cạnh đó, hoặc thay vào đó, ở ít nhất hai loài, một số hoặc toàn bộ vạch tách ra thành hai vạch riêng. Hiện tượng này ở đây gọi là sự phân mảnh (fragmentation). Từ những gì quan sát được, có thể đồng ý với Kottelat rằng hoa văn có thể rất hữu ích và/hoặc có tính chẩn đoán khi nhận dạng và tách các loài Botia. Nhưng điều này không tuyệt đối, vì hoa văn của một số loài biến đổi rất nhiều. Với các loài trong phức hợp B. almorhae vốn giống nhau, khác biệt về màu sắc, dù tinh tế, cũng có thể có ích.
(**Nghĩa là nối lại, hoặc phân nhánh rồi hợp lại. Từ này có vẻ do Hora (1932) dùng đầu tiên, sau đó Menon và Kottelat cũng dùng.)
Hình thái và số đo hình thái
Menon (tr. 13) dùng các đặc điểm hình thái và số đo sau để phân biệt loài: chiều cao thân, chiều dài mõm, chiều dài vây bụng so với lỗ hậu môn, và chiều cao cuống đuôi so với chiều dài cuống đuôi. Phần lớn các đặc điểm này nhìn chung không hữu ích lắm, vì chúng đều có thể dao động theo kích thước và giới tính. Hora (1922) dùng chiều dài mõm so với khoảng cách từ mắt đến nắp mang (tức chiều dài mõm so với phần còn lại của chiều dài đầu), rồi xem mắt nằm ở phần nào của đầu. Các yếu tố này cũng không đáng tin, vì cùng lý do trên. Sau đó Hora đi sâu hơn với vị trí vây lưng, kích thước mắt và hoa văn. Chiều dài đầu bên tính theo SL của mọi loài Botia quá sát nhau và chồng lấn (toàn bộ mẫu dùng ở đây nằm trong khoảng 3,1 – 4,6), nên không có ích. Trong các tỷ lệ số đo hình thái, tỷ lệ chiều cao thân có thể hữu ích, còn tỷ lệ chiều dài mõm hữu ích hơn, khi dùng kèm các yếu tố khác (màu sắc, hoa văn, phân bố). Tuy vậy, tùy số lượng mẫu và tỷ lệ đực cái trong mẫu, kết quả có thể gây hiểu nhầm, nên đừng quá coi trọng khi dùng riêng lẻ. Khi dùng tỷ lệ chiều cao thân theo SL, cần nhớ cá nhỏ có thân thấp hơn kể cả khi đã quy theo SL, còn cá cái có thân cao hơn theo SL. Tỷ lệ chiều dài mõm theo SL cũng có vẻ thay đổi, và dường như do giới tính (con đực có mõm tương đối dài hơn).
Hora cũng cho biết ở hai loài tương tự nhau, bóng bơi có kích thước tương đối khác nhau, và phần khoang trước được bọc trong xương với tỷ lệ khác nhau. Năm 1935, ông lại bàn về điểm này và đưa ra một số hình vẽ. Menon không nhắc đặc điểm này khi nói về Botia, nhưng ở trang 14 có nhắc đến nó với các loài Cobitid và cho rằng nó không có ích. Trong các mẫu Botia đã xem ảnh X-quang, gần như mẫu nào cũng có phần xương của bóng bơi rất giống hoặc giống hệt nhau. Mẫu duy nhất khác biệt đáng chú ý là BMNH 1860.3.19.910, có phần trước bọc trong một hình ống hẹp. Tiếc là mẫu này không có dữ liệu địa điểm xác định được. Nó có thể là B. lohachata, nhưng chưa thể so với ảnh X-quang của topotype B. lohachata.
Nhân tiện, khi so hình thái bóng bơi của nhiều mẫu Botia từ BMNH, USNM và AMS với một số Syncrossus và một số Yasuhikotakia (USNM 107853), kết quả cho thấy ở Botia phần khoang trước được bọc trong xương nhiều hơn so với Syncrossus và Yasuhikotakia. Taki (1972) đã bàn khá chi tiết về điểm này.
Meristics
Menon (tr. 13) nhắc đến số tia vây lưng phân nhánh như một đặc điểm giúp tách loài, nhưng có lẽ là vì ông xếp Syncrossus berdmorei vào Botia. Một số quần thể, dạng hoặc loài có khoảng số tia vây lưng khá nhất quán khi so với các loài, dạng hoặc quần thể khác. Tuy nhiên khác biệt chỉ nhỏ và số đếm đôi khi chồng lấn, nên chỉ dựa vào riêng đặc điểm này thì không đáng tin.
Meristic của các vây khác tương tự nhau và thay đổi ngay trong cùng một loài, quần thể hoặc dạng. Khác biệt duy nhất có thể có là số tia vây bụng cao hơn, nhưng cũng chỉ hơn một hoặc hai tia.
Số đốt sống thường nằm trong phạm vi 3-4 so với số đếm ở các loài khác, với khoảng giá trị giống hoặc rất giống nhau. Số trung bình có thể khác, dù thường chỉ lệch chút ít.
Nhìn chung, hệ thống sông lớn và/hoặc vùng phân bố cụ thể, hay phụ lưu, nhánh phân lưu của hệ thống đó, có thể là điểm xuất phát tốt để phân biệt loài. Lý do là cá sống ở mỗi nơi có xu hướng khác (dù chỉ tinh tế) so với mẫu ở hệ thống khác, cả về màu nền, số lượng và vị trí vạch, lẫn cách các vạch nối vào nhau, rã ra và phân mảnh, v.v. Những khác biệt này có đủ để coi chúng là loài hay phân loài riêng hay không thì cần thêm nghiên cứu bằng các phương pháp như phân tích DNA ty thể, vì các yếu tố bàn ở đây có thể chưa đủ.
Thảo luận
Chưa có bình luận. Hãy là người đầu tiên chia sẻ kinh nghiệm.
Không tải được kiểm tra chống spam nên chưa gửi được bình luận. Hãy thử tải lại trang.
Bình luận cần xác minh người dùng theo quy định; tính năng này sẽ sớm mở.